The alteration of genic expression
Давайте рассмотрим несколько примеров того, как мутации, поначалу опасные, превращаются в безвредные. Один из наиболее ярких случаев связан с мучной молью Ephestia kuehniella. Здесь известен красноглазый мутант, у которого значительно снижена жизнеспособность. Но когда рецессивный ген, отвечающий за покраснение глаз, сочетается с другим рецессивным геном, отвечающим за прозрачность глаз, двойной рецессив становится таким же жизнеспособным, как и нормальный дикий тип (Kühn, 1934).
В чем-то похожий пример можно привести с дрозофилой. Мутация фиолетового цвета (purple) (цвет глаз) приводит к значительному сокращению продолжительности жизни. Другая мутация, arc, влияющая на форму крыльев, приводит к почти такому же значительному сокращению. Но сочетание этих двух факторов приводит к гораздо меньшему сокращению, чем каждый из них по отдельности (Gonzalez, 1923). Цифры (для обоих полов вместе взятых) следующие:
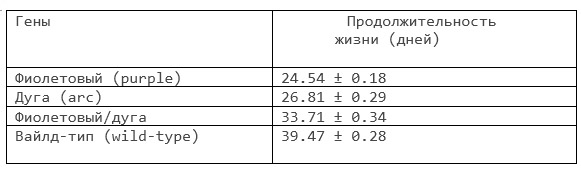
Учитывая, какие тяжелые эффекты оказывают эти два гена по отдельности, благоприятный результат их комбинации весьма поразительный.
Поскольку образцы, использованные в этом эксперименте, не были "изогенными" в отношении их остаточного генного комплекса, возможно альтернативное объяснение, согласно которому повышенная жизнеспособность могла быть обусловлена модификаторами, а не специфической комбинацией двух основных генов.
Брайерли (1938) разработал способ определения «индекса отбора» любой комбинации генов и получил некоторые наводящие на размышления предварительные результаты, в том числе и у дрозофилы, по общим взаимодействиям жизнеспособности многочисленных генов.
В ряде случаев восстановление жизнеспособности происходит постепенно в ходе одного лишь поддержания мутантного поголовья. Классическим анализом этого явления является анализ безглазого мутанта дрозофилы.
Безглазость обусловлена рецессивным геном, содержащимся в 4-й хромосоме. При первом обнаружении было обнаружено, что он значительно уменьшает размер глаз, в некоторых случаях до полного отсутствия, заметно снижает фертильность и оказывает угнетающее воздействие на жизнеспособность. Однако после того, как поголовье безглазых было выведено без какого-либо искусственного отбора в течение нескольких поколений, было обнаружено, что практически у всех мух были нормальные глаза и наблюдалось незначительное снижение плодовитости или жизнеспособности. При скрещивании с нормальным диким типом и повторном выделении рецессивных особей в F2 было обнаружено, что у них снова проявились первоначальные признаки безглазых, хотя и в еще более изменчивой степени (T. H. Morgan, 1926, 1929).
Эти факты объясняются тем, что на проявления безглазости легко влияют другие гены, и что в целом те модификаторы, которые обеспечивают нормальную жизнеспособность и плодовитость, также влияют на нормальный размер глаз. Таким образом, естественный отбор, воздействуя на комбинации модификаторов, присутствующих в составе, быстро добился того, что комбинация, приводящая к уменьшению размеров глаз, была устранена. В условиях конкуренции со своим аллеломорфом дикого типа безглазость была бы элиминирована (ликвидирована); но в популяциях, чистых для безглазости, гены, подлежащие элиминации, будут являться дополнительными модификаторами мутации. В самом широком смысле, был произведен отбор наиболее подходящего генного комплекса.
Аналогичная генетическая модификация рецессивных мутаций, направленная на экспрессию дикого типа, была обнаружена W. W. Marshall и Muller (1917) у Drosophila melanogaster в отношении признаков balloon и curved (воздушного шара и изогнутого) крыла. Еще одним примером у дрозофилы является связанная с полом мутация vesiculated, поражающая крылья: ее можно вернуть к нормальной экспрессии с помощью аутосомных модификаторов (Evang, 1925), Харланд (Harland, 1932) описал очень похожий ботанический случай дефицита хлорофилла у хлопчатника; в некотором смысле это еще более поразительно, поскольку первоначальное проявление генов (в данном случае задействованы три пары) было явно летальным. И здесь инбридинг и селекция снова привели к получению достаточно жизнеспособной формы, в то время как скрещивание ее с нормальными особями привело к повторному появлению летальных сегрегантов. Генетический механизм подобен тому, который действует в классическом случае с крысами Касла в капюшонах и изменяет их поведение в положительную или отрицательную сторону путем накопления модификаторов (Касл и Пинкус, 1928), хотя селективные последствия, конечно, различны.
Отбор такого рода, как теперь выясняется, является постоянным и действительно нормальным процессом. Среди животных, используемых для генетического анализа, стало почти обычным делом обнаружить, что мутантные типы, которые поначалу чрезвычайно трудно сохранить, через несколько поколений становятся вполне жизнеспособными. Это неоднократно происходило, например, у Gammarus (рачков) (Sexton, Clark and Spooner, 1930), и м-р Э. Б. Форд говорит мне, что это часто происходило в его культурах других мутантных линий того же вида. Недавно описанный пример у дрозофилы — белый глаз у D. obscura (Crew and Lamy, 1932). Этот рецессивный мутант поначалу был очень хрупким, но его жизнеспособность постепенно улучшалась при инбридинге. Точно такой же ход событий наблюдался у безволосых мутантов мышей (Crew and Mirskaia, 1931), показывая, что это явление происходит у млекопитающих. В растениях мы говорили о хлопке: аналогичный случай был обнаружен у настурции (Weiss, цит. по: R. A. Fisher, 1931, стр. 350).
Во всех случаях объяснение в основном аналогично тому, которое есть у безглазых. Экспериментатор, однако, будет также пытаться сохранить характер мутанта в тонусе: поэтому он будет отбирать комбинации, которые сохраняют жизнеспособность на высоком уровне, не изменяя видимой экспрессии гена, так что этот процесс может занять немного больше времени.
Другим методом, с помощью которого жизнеспособность может быть улучшена, является мутация в соответствующем первичном гене. В качестве примера можно взять работу Мора (1932). Две популяции рудиментарно-крылатых плодовых мушек (Drosophila melanogaster) долгое время сохранялись в качестве инбредных культур. У обоих видов крылья в конечном итоге стали почти нормальными. Анализ показал, что это было связано с отбором менее экстремального аллеля рудиментарного гена, который, предположительно, возник в результате мутации из полного рудиментарного гена, а затем был одобрен отбором из-за его менее экстремальных эффектов. Интересным моментом является то, что эти почти нормальные аллели не были идентичны в двух случаях, а представляли собой разные этапы в множественном ряду.
Р. Л. Берг (1941) обнаружил, что, предположительно, благодаря этой форме отбора, доминирование в лабораторных популяциях становится более интенсивным, чем в дикой природе (см. стр. 75 и далее).
Обратный эффект обнаруживается, когда ген, который у одного вида или разновидности безвреден, становится вредным при скрещивании. Объяснение состоит в том, что экспрессия гена в его нормальном состоянии стала настолько обусловлена благоприятными модификаторами, что не оказывает никакого вредного воздействия; Однако при ауткроссинге он оказывается в генической среде, в которой отсутствуют некоторые или все эти модификаторы, и, следовательно, выражает себя способами, неблагоприятными для жизнеспособности. Мы упоминали о таком случае в «Скрещивании рыбы» Гордона (стр. 66). Пример, особенно подходящий для нашего сегодняшнего обсуждения, взят из работы Стокарда (1931, 1941) о собаках. У породы сенбернар проявляются различные симптомы гиперпитуитаризма (hyperpituitarism), которые симулируют патологическое состояние, известное как акромегалия. Спаривание между сенбернарами дает нормальные пометы; но когда сенбернар скрещивается с немецким догом, породой, которую можно рассматривать как простой гигантский тип без признаков гипергипофиза, значительная часть потомства F₁ (и более поздних) обнаруживает серьезные нарушения во время своего роста, в частности гидроцефалию и паралич задних конечностей, причем эти эффекты явно имеют генетическое происхождение.
Человек, по-видимому, продвинул породу сенбернаров настолько далеко, насколько это было возможно, в сторону крупных размеров, тяжелой челюсти и других последствий чрезмерной или односторонней работы гипофиза; и в процессе этого были накоплены комбинации модификаторов, которые защищают организм от вредного воздействия его чрезмерного развития желез. Когда порода подвергается ауткроссингу, защитные гены в большей или меньшей степени ослабевают, что приводит к соответствующим негативным последствиям. Современный выставочный тип бульдога также был выведен в результате селекции на гены, вызывающие аномалии структуры и функции щитовидной железы; здесь порода еще больше продвинулась к пределу развития желез, поскольку значительная часть самцов частично или полностью стерильна.
Примером, в котором генная экспрессия изменяется без заметного влияния на жизнеспособность, является гибрид между Drosophila melanogaster и D. simulans. Около 50 процентов из них не имеют щетинок, присутствующих у обоих родительских видов, т.е. определенные комбинации модификаторов от двух родительских видов подавляют экспрессию определенных генов, контролирующих развитие щетины (Biddle, 1932).
Отличными примерами искусственного отбора являются работы Р. А. Фишера (1935, 1938), который путем многократного обратного скрещивания привнес доминантные или полудоминантные гены домашних пород домашней птицы в невыбранный генокомплекс (unselected gene-complex) диких птиц джунглей.
К сожалению, термин "доминантный" используется очень широко, некоторые авторы используют его для обозначения того, что гетерозигота неотличима от гомозиготы, в то время как другие называют доминантным любой ген, эффекты которого при однократном введении (in single dose) можно вообще различить: например, Боуотер (1914) назвал меланическую форму моли Aplecta nebulosa доминантной, хотя гетерозигота, как он сам далее утверждает, имеет промежуточную экспрессию; и все так называемые доминантные мутации у Drosophila melanogaster либо смертельны в двойной дозе, когда, конечно, видимый эффект гомозиготы определить невозможно, либо их гетерозиготная экспрессия менее выражена, чем у гомозиготной (например, аномалия живота).
По этой причине, а также потому, что во многих отношениях неудовлетворительно иметь положительные и отрицательные термины, такие как доминантный и рецессивный, для обозначения градаций в том, что на самом деле является единой шкалой положительных эффектов, я бы предположил, что какой-то другой термин, такой как экспрессия одной дозы (single-dose expression) (или гетерозиготная экспрессивность (heterozygous expressivity)), был бы более подходящим. Полная экспрессия одной дозы была бы эквивалентна истинному доминированию; нулевая экспрессия одной дозы – рецессивности; и подлинно промежуточное выражение к отсутствию доминирования, при котором гетерозигота является промежуточным между двумя гомозиготами. Тимофеев-Рессовский (1934b) рассматривает выразительность с несколько иной точки зрения.
У домашних пород полидактилия проявляется по-разному при однодозовом выражении (single-dose expression). Полидактилия – порок развития, характеризующейся большим, чем в норме, количеством пальцев на руках или ногах у человека, собак, котов и лошадей. Противоположным отклонением является олигодактилия. Пеннетт и Пиз (1929) обнаружили, что она ведет себя обычно как полная доминанта, но иногда как рецессивная, а иногда как нерегулярная частичная доминанта. Чтобы объяснить эти факты, они постулировали один доминантный ингибитор, препятствующий экспрессии гена полидактилии, и второй, способный подавлять действие первого. Хатчинсон (1931) указывал, что более простое объяснение дает теория Фишера, согласно которой существует один ген, который остается постоянным, но отношения доминирования которого различаются в различных генных комплексах. Кроме того, в диком генокомплексе, как показал Фишер, гомозиготу можно определенно отличить от гетерозиготы по наличию более крупных дополнительных пальцев ног с большим количеством костей. Произошло то, что первоначально промежуточная однодозовая экспрессия у большинства домашних пород стала более полной. Ген полосатого оперения (gene for barred plumage) ведет себя несколько похожим образом. Наиболее интересными являются результаты с геном гребня (хохолка) на голове (gene for crest on the head). В диком генокомплексе ген гребня в однократной дозе производит только гребень; однако в двойной дозе (in double dose) он вызывает не только необычно большой гребень, но и мозговую грыжу вредного характера. У японской шелковистой птицы грыжа никогда не образуется, и действие гена хохолка одинаково как при однократной, так и при двойной дозе. Таким образом, во-первых, ген стал полностью доминантным при одомашнивании вместо промежуточного; во-вторых, его влияние на грыжу подавляется модифицирующими факторами (ср. с. 70, 79); и, в-третьих, в диком генокомплексе два его эффекта имеют разный тип: вредная грыжа является полностью рецессивной, нейтральный гребень частично доминирует.
Другой аспект приспособления генной экспрессии к потребностям организма связан со стабильностью экспрессии генов. Планкетт (1932), например, проанализировал хорошо известный в общих чертах факт, что признаки дикого типа обычно гораздо менее модифицируются изменениями окружающей среды, чем те, которые определяются мутантными генами. Его анализ был по большей части ограничен температурными эффектами у дрозофилы, но этот принцип может быть широко обобщен. Объяснение основано на том факте, что гены в большинстве случаев связаны со скоростью процессов (см. Гольдшмидт, 1938а). Кривые, выражающие скорость процессов, в общем имеют наклонную S-образную форму, стремящуюся к конечному горизонтальному положению равновесия (Ford and Huxley, 1929). У генов дикого типа уплощение обычно завершается до достижения имагинального состояния (или соответствующей окончательной стадии), в то время как у большинства мутантных генов кривая на этой стадии все еще находится в восходящей фазе. Таким образом, довольно небольшие нарушения кривой будут иметь заметные эффекты для мутантных генов, но очень слабые для признаков дикого типа.
Не может быть никаких сомнений в том, что отбор работал над тем, чтобы регулировать скорость процессов, контролируемых генами, таким образом, производить этот результат в генах дикого типа, придавая таким образом высокую степень стабильности соответствующим признакам. Как указывает далее Планкетт, эволюцию полного доминирования, о которой идет речь в нашем следующем разделе, можно рассматривать как частный случай этого принципа, а именно, что в общем естественный отбор благоприятствует тому генотипу, который дает наиболее устойчивый и, следовательно, однородный фенотип.
В тех случаях, когда особые обстоятельства требуют обратного эффекта, что различные условия должны удовлетворяться совершенно различными фенотипами, отбор часто действует таким образом, чтобы вызвать пластичность генического выражения. Эта пластичность, однако, обычно относится к особому типу, действующему с помощью какого-то переключающего механизма, так что образуются два или несколько контрастных фенотипов, каждый из которых относительно стабилен. Классическим случаем является экологический контроль касты у социальных перепончатокрылых, в результате чего один и тот же генотип может быть получен как для кастрации, так и для фертильных самок, а промежуточные формы являются редкими аберрациями. По-видимому, такой же механизм действует в отношении крылатости и бескрылости тлей, а также в определении пола окружающей средой (environmental sex-determination).
Тот же результат, конечно, может быть обеспечен генетически, либо с помощью специальных хромосомных механизмов, как при генетическом определении пола, либо с помощью селективного баланса, приводящего к полиморфизму, что особенно хорошо иллюстрируется бабочками с полиморфно-миметическими формами (см. стр. 101, 122).
Эволюция доминирования
The evolution of dominance
Р. А. Фишер (1928, 1931, 1934) расширил эту концепцию изменчивости экспрессии генов модификаторами, чтобы объяснить доминирование в целом или, по крайней мере, многие особенности доминирования, обнаруженные в природе. Его аргументация заключается в следующем. Мутация всегда приводит к появлению новых генов; большинство из них неизбежно будут вредными, поскольку в такой тонко настроенной системе, как генный комплекс, большинство изменений, скорее всего, будут к худшему, если их не компенсировать. Кроме того, мы знаем как эмпирический факт, что большинство мутаций повторяются. Очевидно, что подавляющее большинство мутантных генов будут переноситься однократно, так что будет преимуществом минимизировать любую активность, проявляемую ими в гетерозиготном состоянии. Таким образом, даже когда вредная мутация при своем первом появлении проявляет значительную однодозовую экспрессию, то, если она производится многократно (как это имеет место при большинстве мутаций), открывается путь к тому, чтобы она была принудительно вытеснена в рецессивность путем отбора, действующего на остальной состав генокомплекса. Если она относительно многочисленна (а недавние исследования диких популяций – например, К. Гордон (1936), Дубинин и другие (1936) и Секстон и Кларк (1936а) показали удивительно высокую частоту различных рецессивов, которые несут мухи Drosophila и креветки Gammarus соответственно), то отбор может воздействовать на гомозиготное состояние и сделать его также неактивным. Таким образом, как указывает Фишер, мутации могут быть сведены к рангу специфических модификаторов, обычно недействующих, но оказывающих влияние в аномальных генных ситуациях.
Демонстрируя интенсивность отбора, направленного против определенных рецессивных мутаций, К. Гордон (1935) выпустил 36 000 особей Drosophila melanogaster в Англии, где они не являются эндемичными. Первоначально популяция содержала 50% рецессивного гена ebony (25% мух чистокровного дикого типа, 25% мух с эбони и 50% гетерозиготных по эбони). Через 120 дней (в 5-6 поколениях) частота гена ebony снизилась до 11%. Из полученных данных следует, что в каждом поколении некоторые гетерозиготы, а также гомозиготы были элиминированы отбором; это согласуется с тем фактом, что ebony обладает незначительной одноразовой выраженностью (экспрессией одной дозы) (ebony has a slight single-dose expression).
Еще одним важным фактом является то, что в природе рецессивные вещества почти полностью отсутствуют в Х-хромосоме дрозофилы, где, конечно, они подвергаются (у самцов) отбору в однократной дозе (they are exposed (in males) to selection in single dose)(стр. 117). Дубинин и другие (1936) обнаружили более одного обнаруживаемого мутантного (рецессивного) аллеля у каждой дикой плодовой мухи! Они также показали, что частота различных мутантных генов изменялась в течение трех лет, некоторые становились все более частыми, а другие редкими.
В поддержку этой точки зрения мы приведем некоторые факты, показывающие, насколько легко степень доминирования одного гена может быть изменена присутствием других генов. Классическим случаем является рог у домашних овец (Wood, 1905). Разница между рогатыми и безрогими породами зависит от одного гена-различия, но в то время как однократная доза гена рога приводит к образованию рогов у баранов, двойная доза необходима для овец. Таким образом, один и тот же ген является доминирующим во внутренней среде самцов, но рецессивным в внутренней среде самок. Ландауэр (Landauer, 1937) обнаружил, что у птиц ген вьющегося оперения, эффекты которого обычно не полностью доминируют, превращается в почти полностью рецессивный при наличии определенного рецессивного модификатора в двойной дозе. Данн и Ландауэр (1934, 1936) с помощью гена Rumpless, который редуцирует хвост и задний конец тела, смогли пойти дальше и показать, что он может быть преобразован либо в доминантный, либо в рецессивный путем скрещивания с различными породами с последующим отбором на доминантность или рецессивность соответственно. У мышей, с другой стороны, ген черного цвета, который обычно является полностью рецессивным, может быть преобразован в неполную доминанту с помощью модификаторов (Barrows, 1934). У Drosophila virilis доминантный ген округлых крыльев преобразует ген взъерошенных щетинок из рецессивного в неполный доминантный (Lebedeff, 1933). Мэзер и Норт (1940) описывают ген у мышей, единственным известным эффектом которого является модификация отношений доминирования гена агути (agouti).
Исторический интерес представляет случай, описанный Федерли (1911) о поведении белых пятнистостей у личинок моли Pygaera. У P. anachoreta обнаружена непятнистая разновидность, которая ведет себя как простая рецессивная по отношению к нормальному пятнистому состоянию. У P. curtula, однако, существует только непятнистое состояние. У F1 скрещивания двух видов, использующих пятнистую форму P. anachoreta, пятнистость выражена в промежуточной форме, т.е. ее доминирование частично упразднено. Двадцать пять лет тому назад этот факт казался настолько примечательным, что такой авторитет, как Стёртевант (1912), не был склонен его принять; однако в настоящее время подобное изменение экспрессии генов модификаторами стало обычным явлением.
Нам не нужно умножать примеры. Очевидно, что доминирование гена может быть радикально изменено в зависимости от генической среды, в которой он оказался.
Следующий шаг – показать, что этот несомненный факт изменяемости степени доминантности был использован в ходе эволюции для того, чтобы сделать наиболее часто повторяющиеся мутации рецессивными, чтобы уменьшить степень их гетерозиготной экспрессии, включая снижение жизнеспособности, которое сопровождает большинство мутаций при их первом появлении.
У хлопка Харланд (1933) и Хатчинсон и Гхош (1937) изучали мутацию морщинистого карлика (crinkled dwarf). Она встречается у сорта Gossypium barbadense, произрастающего на острове Си-Айленд, и является полностью рецессивной. При скрещивании с неродственными штаммами одного и того же вида она не является полностью рецессивной, но демонстрирует низкую степень экспрессии при одной дозе.
Однако, когда мутация была введена из G. barbadense в родственный вид G. hirsutum (горный хлопчатник), оказалось полное отсутствие доминирования нормального типа. F1 является промежуточным значением, так что на первый взгляд мы можем представить, что экспрессия одной дозы составляет около 50 процентов; но тот факт, что F2 дает большой и не поддающийся классификации диапазон, показывает, что степень доминирования должна находиться под влиянием ряда модифицирующих генов. Это подтверждается результатами обратного скрещивания видового гибрида F1, несущего ген морщинистой карликовости, с различными штаммами G. hirsutum. В некоторых линиях была восстановлена полная или почти полная рецессивность морщинистого карлика, в то время как в других экспрессия при однократном введении была точно промежуточной, при этом класс гетерозигот был четко отделим от гомозигот. Как ясно показали Хатчинсон и Гхош, полученные результаты полностью подтверждают точку зрения Р. А. Фишера. Более поздние работы (см. резюме Harland, 1941) показали, что он (морщинистый карлик) также встречается как очень редкий мутант у G. hirsutum. Морщинистый барбаденс демонстрирует промежуточную однодозовую экспрессию в F1 с hirsutum, но является рецессивным – при переносе в чистый генокомплекс гирсутум. Однако, когда hirsutum crinkled переносится в чистый генокомплекс barbadense, он ведет себя как промежуточный продукт.
Харланд (1941) развивает тезис о том, что доминирование нормальных аллелей в хлопке может быть построено значительными различными способами. Таким образом, признаковое пятно лепестков как у barbadense, так и у hirsutum основано в первую очередь на главном гене, который, однако, существует в различных аллельных формах у обоих видов. Но в то время как в барбаденсе действие этого основного гена должно быть усилено рядом плюсовых модификаторов для достижения его полного эффекта, у hirsutum основной ген сильнее и не требует модификаторов (или требует их мало). Как следствие этих фактов, мы находим, что (1) у барбаденс модификаторы оказывают некоторое положительное действие (небольшое пятно) даже при отсутствии основного гена; (2) ген пятна (spot) barbadense, перенесенный в генокомплекс hirsutum, имеет очень слабый эффект, и лепестки едва пятнистые; (3) ген пятна hirsutum, перенесенный в генокомплекс barbadense, усиливается присутствующими там модификаторами и образует пятно, которое больше и интенсивнее, чем любое ранее известное; (4) скрещивание пятнистых форм одного вида с непятнистыми форм другого дает градуированный F2 со всеми интенсивностями пятнистости; (5) F2 из непятнистых форм тех же двух видов производит некоторые пятна размером с обычный барбаденс, т.е. только за счет рекомбинации или модификаторов, предположительно от обоих видов. У C. arboreum обнаружен еще третий способ получения пятнистого признака, главного гена нет, но пятнистость зависит от генов, которые у barbadense действуют как модификаторы, но здесь их следует называть многофакторным рядом или полигенной комбинацией.
Харланд предполагает, что если признак приносит пользу виду, то он может быть легче сохранен, несмотря на рецессивные мутации, если его экспрессия зависит от нескольких генов. Однако этот вывод не выглядит обоснованным. Преимущество метода использования одного главного гена вместе с модификаторами, по-видимому, заключается скорее в том, что экспрессия признака остается относительно постоянной в нормальном диапазоне экологических конаций, но при этом сохраняется значительный запас потенциальной изменчивости для адаптации к новым или экстремальным условиям. Одногенный контроль даст большую стабильность, чисто многофакторный контроль (только с помощью «модификаторов») даст большую пластичность. Контроль с помощью одного гена позволит признаку быть более легко утраченным под влиянием отбора или дрейфа. По-видимому, в связи с этим, у hirsutum, где пятнистость зависит только от одного гена, пятнистый признак был утрачен у всех сортов, за исключением нескольких редких сортов.
Возвращаясь к морщинистому карлику, применяются те же принципы. Нормальность (неморщинистость) у барбаденса зависит от одного сильного аллеля, такого как пятно в гирсутуме. Нормальность в hirsutum, с другой стороны, зависит от более слабого основного неморщинистого аллеля, а также от ряда модификаторов. Они не только способствуют доминированию нормального над морщинистым, но и делают чистые морщинистые формы более нормальными, как по внешнему виду, так и по жизнеспособности. Путем тщательного отбора были получены новые комбинации модификаторов, которые делают морщинистый гирсутум практически неотличимым от нормального. При скрещивании двух видов с использованием нормали одного и морщинистой формы другого, F2 колеблется от фенотипически нормальных форм со всеми степенями морщинистости до «супер-морщинистых» типов, которые являются почти смертельными. Эксперименты с пятнами лепестков демонстрируют два типа доминирования. При хирсутуме эффект Фишера явно действует, с модификаторами, помогающими слабому «нормальному» гену, а также модифицирующими рецессивный ген в сторону нормальности. Рецессивная модификация протекает гораздо сложнее там, где существует почти доминантный главный ген, как у барбаденсе. Это может быть связано с расширением эффекта Холдейна (стр. 82) путем выбора «более сильных» нормальных аллелей. Харланд и Аттек (1941) считают, что это также работает для морщинистого карлика у некоторых видов, но доказательства смерти не являются решающими. Далее они указывают, что эффект Холдейна, вероятно, будет более важен в самоопыляющихся формах, где эффект Фишера не может быть так легко вызван (Haldane, 1939a). Там, где происходят оба типа опыления, как в случае с Gossypium, несомненно, «случайные» события, такие как время возникновения подходящих мутаций, определят, какой механизм будет развиваться (см. также Silow, 1941).
Важным эмпирическим фактом, который был одним из тех, которые привели Фишера к обнародованию своей теории, является поведение множественных аллелей. Почти во всех исследованных до сих пор случаях аллель дикого типа обнаруживает полное доминирование над всеми низшими членами ряда, тогда как они при скрещивании друг с другом демонстрируют промежуточную экспрессию. Так, нормальный красный цвет глаз у диких дрозофил полностью доминирует над белым, слоновой костью, эозином, вишней и всеми другими членами белого аллеломорфного ряда, но белый, скрещенный с эозином или слоновая кость с вишней, дает F1 с глазами, промежуточный по цвету между двумя родителями.
Исключение из этого правила, на которое впервые обратил внимание Форд (1930), касается влияния того же ряда (серий, series) генов на внутренний признак, который, по-видимому, не имеет селективного значения. Добжанский (1927) показал, что гены серий белоглазости (genes of the white-eye series) влияют на форму сперматеки (орган женских половых путей насекомых) в небольшой, но постоянной степени. В то время как, как мы уже видели, все гены являются рецессивными по отношению к генам дикого типа в отношении воздействия на глаза, они демонстрируют промежуточную экспрессию в отношении этого вторичного воздействия на сперматеку. Гены окраски тела эбеново-сажистого ряда (body-colour genes of the ebony-sooty series) обнаруживают такое же действие на сперматеку и ту же дифференциальную экспрессию в отношении их влияния на внешний и внутренний характер (за исключением того, что эбеновый цвет тела не является полностью рецессивным). Наиболее очевидным объяснением является то, что отбор воздействовал на изменение выраженности неблагоприятных внешних признаков, в то время как никакого такого эффекта не требовалось и не было произведено в отношении безвредного вторичного внутреннего эффекта. Мы также можем сравнить различные соотношения доминирования вредных и безвредных эффектов фактора гребня (crest factor) у птиц (стр. 73).
Стоит отметить, что эта дифференциальная экспрессия гена по отношению к двум признакам, на которые он влияет, не может быть согласована ни с одной жесткой формой «инактивационной» теории (rigid form of the “inactivation” theory) рецессивности. Это расширение старой теории присутствия и отсутствия (Presence and Absence theory), которое очевидно несостоятельно в своей первоначальной форме, утверждает, что степень рецессивности соответствует степени частичной частичной потери или инактивации гена при мутации в тот или иной из его рецессивных аллеломорфов. Из того, что мы знаем о действительно мутациях-дефектах (deficiency-mutations), при которых отсутствует часть хромосомы, ясно, что потеря может вызывать эффекты той же природы, что и генные мутации (см., например, Mohr, 1920, который показал, что потеря белого (white) локуса вызывает ультра-белый (ultra-white) эффект, более интенсивный по цвету, чем белый), так что теория инактивации иногда может быть применима. Но демонстрация того, что некоторые гены могут становиться доминантными или рецессивными в зависимости от генного комплекса, показывает, что в лучшем случае она может иметь частичное применение. Примечательно также, что истинное отсутствие гена у ультрабелых приводит к некоторым эффектам (форме сперматеки), которые не являются рецессивными!
Как указывает Р. А. Фишер (1931), большинство признаков большинства домашних пород или, по крайней мере, наиболее очевидные признаки, особенно рисунок и окрас, зависят от мутаций, рецессивных по отношению к дикому типу. Казалось бы, ясно, что человек воспользовался здесь двумя фактами: во-первых, что более или менее рецессивные мутации распространены в природе и, во-вторых, что они могут быть легко зафиксированы путем скрещивания двух сходных особей, чтобы использовать при своем отборе отличительные и более или менее рецессивные признаки. Более того, естественная тенденция концентрироваться в целях размножения на особях, проявляющих признаки в более экстремальной форме, в случае генов, первоначально в значительной степени рецессивных, автоматически стимулирует производство полной рецессивности. Однако, если бы ген имел более чем среднюю однодозовую экспрессию, отбор имел бы тенденцию делать его более доминирующим. Таким образом, в целом искусственный отбор человека будет способствовать либо полному доминированию, либо полной рецессии, хотя и по причинам, совершенно отличным от тех, которые действуют в природе. Но, как уже упоминалось, отличительные признаки домашних пород у большинства видов обычно рецессивные.
Главным исключением является птицеводство, где большинство “домашних” признаков частично или полностью доминируют (majority of “domestic” characters are partially or wholly dominant). Фишер (1931) предполагает, что это различие связано с тем фактом, что в странах их происхождения домашние формы, даже в наши дни, а тем более в более ранние времена, часто спаривались с дикими петухами. В таком случае рецессивные признаки (рицессивы, recessives) не могли бы быть легко зафиксированы (закреплены), в то время как частичные доминанты, по крайней мере, появлялись бы вновь в каждом поколении; таким образом, доминанты, как правило, включались бы в расу (вид, race) в результате естественного отбора, осуществляемого человеком. Дальнейшим результатом было бы повышение степени их доминирования за счет того, что новые разновидности были бы почти полностью гетерозиготными, а человек отбирал бы наиболее ярких особей для размножения.
Мы видели (стр. 72), что его экспериментальные испытания подтвердили эту гипотезу.
Мархлевски (1941) недавно подтвердил теорию Фишера на собаках. Здесь черный цвет первоначально преобладал над желтым; тем не менее, у динго и у различных домашних пород желтый цвет стал доминирующим благодаря подбору модификаторов.
Рецессивность признаков у других домашних видов далеко не столь универсальна, как поначалу склонялся к мысли Фишер (Castle, 1934, о различных видах; J. A. F. Roberts and White, 1930, и J. A. F. Roberts, 1932, об овцах). Представляется ясным, однако, что человек, используя свои методы разведения, модифицировал однодозовую экспрессию генов дикого типа у своих домашних животных, подчеркивая (accentuating) рецессивность генов с низкой и доминирование генов с высокой однодозовой экспрессией; и что в то время как у большинства видов это приведет к преобладанию рецессивных признаков (recessive breed-characters), у домашней птицы будет иметь тенденцию к преобладанию доминирующих.
Следует отметить, что Райт (1934а) не согласен со взглядами Фишера на эволюцию доминирования, но хочет приписать рецессивность частичной инактивации гена (стр. 80). Альтернативная гипотеза о происхождении рецессивного характера большинства мутаций была предложена Холдейном (1930; и см. 1939а). Это основано на интересном взгляде на механизм действия генов, а именно на том, что разные множественные аллеломорфы производят разное количество некоторого вещества, но только до определенного значения насыщения: помимо этого они не могут производить никакого фенотипического эффекта. Таким образом, любая мутация в отрицательном направлении ниже этого уровня может быть обнаружена, но мутации в положительном направлении – нет. В результате может легко накапливаться множество различных множественных аллелей разной силы, но все они выше того, что необходимо для получения значения насыщения, без фенотипического обнаружения. Если сейчас происходят минус-мутации, Холдейн предполагает, что для того (я говорю телеологическим языком), чтобы предотвратить их видимое влияние на жизнеспособность гетерозиготы, будут отобраны те более высокие аллели, которые в сочетании с мутацией не опустятся ниже уровня насыщения.
Другими словами, будут выбраны более высокие члены группы (higher members of the series will be selected), и результатом будет видимое (заметное) доминирование (visible dominance). Форд, однако, указал, что сам уровень насыщения будет определяться по отношению к остаточному (остальному, residual) генокомплексу, так что даже здесь действие, постулированное Р. А. Фишером, может работать, хотя в некоторых случаях и в дополнение к механизму Холдейна. В любом случае, оба предположения предполагают отбор, действующий на гены, отличные от мутантного. С тех пор, как было написано выше, Форд (1940 b) показал, что эффект Фишера может быть вызван искусственно. Смородинная моль Abraxas grossulariata имеет одногенную дикую разновидность (lutea) с желтым, а не белым цветом основания, которая обычно дает промежуточный F1 с диким типом. С помощью четырех поколений плюсового и минусового отбора Форд наделил ген как полным доминированием, так и полной рецессией.
Сьюолл Райт (1929, 1934а) критикует общую концепцию файбера на том основании, что имеющееся давление отбора будет недостаточным для достижения предполагаемых результатов. Тем не менее, нет никаких сомнений в том, что доминирование «нормального» аллеля дикого типа эволюционировало; и Планкетт и Мюллер независимо друг от друга (см. Muller, 1935) показали, как потребность в стабильности экспрессии генов в процессе развития может привести к эволюции доминирования.
Каким бы ни был используемый метод, кажется очевидным, что доминантность и рецессивность следует рассматривать как изменяемые признаки, а не как неизменяемые врожденные свойства генов. Доминантные гены, или многие из них, не рождаются доминантными; им навязано доминирование. Мутации могут стать доминантными или рецессивными в результате действия других генов в генном комплексе. Таким образом, эволюция доминантности (evolution of dominance) рассматривается в значительной степени как адаптация к вредной природе большинства мутаций.
Р. Л. Берг (1941) указывает, что интенсивность доминирования (intensity of dominance) будет избирательно (отбором) уравновешиваться накоплением вредных рецессивностей (вредных факторов рецессии, deleterious recessives), которое оно (доминирование) делает возможным, и что оно (здесь не совсем понятно, доминирование или накопление вредных рецессивностей или и то, и другое?) будет иметь тенденцию к уменьшению (that it will tend to be decreased) у видов, состоящих из не полностью изолированных групп. Дополнительная пластичность, придаваемая таким образом таким видам, будет дополнением к той, которую выводил Райт (стр. 229).
В качестве еще одного примера адаптации самого генетического механизма Фишер (1930а, с. 15) приводит пластичность, придаваемую сексуальностью.
Во-первых, она позволяет эволюционно продвинуться вперед за счет сочетания новых мутаций. Если в популяции за определенный промежуток времени происходит несколько благоприятных мутаций, то у видов, получающих перекрестное оплодотворение половым путем, они могут быть объединены. Но если вид бесполый, то они почти наверняка останутся изолированными, каждая из них (мутаций) будет ограничена одной линией; для их объединения необходимо отобрать один мутант (one mutant must be selected), до того как он станет основным типом, и только тогда у второй благоприятной мутации появится шанс объединиться с первой.
Во-вторых, она (разнополость) позволит при рекомбинации создавать новые комбинации генов и таким образом использовать существующую генетическую изменчивость вида для быстрого изменения типа в соответствии с изменившимися условиями. Таким образом, она способствует как прогрессивной специализации (см. главу 9), так и пластичности в ответ на изменения и возможности окружающей среды. Кроме того, как подчеркивает Фишер (Fisher 1932), она выполняет функцию, связанную с вредной природой большинства мутаций. Ибо, допуская рекомбинацию, она позволяет мутациям проявляться в гомозиготной форме и тем самым облегчает устранение более вредных. Устранение будет более значительным (Элиминация будет более интенсивной) тогда, когда частота гомозиготности увеличивается за счет инбридинга или самооплодотворения. Таким образом, вариации в типе полового размножения изменят акцент на его эволюционной функции (Darlington, 1939): эволюционная пластичность будет в большей степени поощряться скрещиванием, эволюционная стабильность — инбридингом. Инбридинг также будет способствовать как отвержению неблагоприятных, так и распространению благоприятных мутаций (см. также с. 136, 140).
Рекомбинационная пластичность будет особенно ценна, когда условия изменятся и станут менее благоприятными. Это, несомненно, является причиной того, что так много организмов пользуются тем или иным способом бесполого размножения (который является более эффективным в качестве репродукции) до тех пор, пока условия окружающей среды благоприятны, но прибегают к половому процессу, как только они становятся неблагоприятными. Так обстоит дело, например, со многими простейшими, коловратками, низшими ракообразными и тлями.
Биологическое значение этого было ясно выявлено в ходе тщательных генетических исследований Paramecium и других инфузорий (Jennings, 1929). В целом было обнаружено, что половое размножение (конъюгация, спаривание) вызывает увеличение генетической изменчивости в результирующей популяции, и хотя (как и у высших организмов) большинство представителей нового типа могут рассматриваться как неблагоприятные (неудачные, unfavourable), некоторые из них действительно (фактически) или потенциально лучше приспособлены, чем те, которые преобладали до конъюгации. Таким образом, конъюгация во многих случаях обеспечивает повышенную вероятность возникновения рекомбинации, способной лучше справляться с необычными и неблагоприятными условиями. Точно такие же результаты были получены Бантой и его коллегами с низшими ракообразными (см. Давенпорт, 1933).
В другом месте (стр. 113) обращается внимание на действие импульса к миграции в неблагоприятных условиях. Это также придает вид пластичности, но в данном случае за счет увеличения диапазона экологических возможностей, доступных данной наследственной конституции, вместо увеличения диапазона наследственных конституций, доступных для того, чтобы справляться с данными условиями окружающей среды (доступных для адаптации к данным условиям окружающей среды). Это, впрочем, вряд ли можно назвать адаптацией генетического механизма.
А вот своеобразная реакция кроссинговера (crossing-over) на температуру вполне может, как предположил мне м-р Э. Б. Форд, попасть в эту категорию. У дрозофилы, наиболее изученного вида (Plough, 1917), кроссинговер меньше всего проявляется при температурах, близких к оптимальным для данного вида, и быстро возрастает как с повышением, так и с понижением температуры. Усиление кроссинговера, конечно, приведет к увеличению рекомбинации генов, расположенных в хромосомах одного вида, и это будет иметь значительный эффект для таких форм, как дрозофила, где хромосом немного. Таким образом, неблагоприятные температуры увеличат генетическую вариабельность, доступную популяции.
Открытие позиционного эффекта (position-effect) (стр. 48, 92) позволяет нам сделать вывод о некоторых путях, о которых ранее не подозревали, по которым должен был развиваться (эволюционировать) сам эволюционный механизм. Если, как теперь представляется установленным, взаимодействие некоторых или всех генов с ближайшими соседями по той же хромосоме оказывает существенное влияние на их экспрессию, то ясно, что все гены в данной хромосоме должны быть тонко подогнаны друг к другу, чтобы создать гармонично функционирующее целое.
В любом случае, любой данный ген должен быть адаптирован к своим соседям в пределах определенного хромосомного расстояния; гены, находящиеся в этом помежутке, будут адаптированы как к гену в нашей гипотетической начальной точке, так и к другим, расположенным внутри диапазона, таким образом, придавая хромосоме в целом определенную организацию.
Это предполагает новую концепцию хромосом. Вплоть до недавнего времени было возможно и обычно рассматривать их как простые средства передачи и распределения наследственной конституции, без какой-либо функциональной организации содержащихся в них генов. Предполагалось, что они расположены случайным образом, подобно цветным бусинкам, подобранным слепым наугад и нанизанным на нитку; и предполагалось, что их расположение в хромосомах не имеет никакого отношения к их влиянию на видимые или другие признаки.
Однако с открытием позиционного эффекта это предположение, как непреложный принцип, было опровергнуто. Хотя многие гены, влияющие на один признак, неравномерно разбросаны по хромосомам, а гены, влияющие на разные признаки, часто соприкасаются, все же некоторая степень неслучайного расположения имеет место (Morgan, Schultz and Curry, 1940). В основе своей и по происхождению их расположение, несомненно, случайно, и то, что мы знаем о частоте секционных перестроек (стр. 90, 362), показывает, что гены часто должны менять своих соседей по сути случайным образом. Но затем этой случайности необходимо придать функциональную полировку: соседние гены должны быть приспособлены друг к другу путем новой мутации и путем рекомбинации. Продолжая нашу метафору, на ожерелье слепого смотрят и избавляются от цветовых дисгармоний, выбирая новые бусины того же общего цвета, но немного другого оттенка.
Тот же общий тип адаптации к позиционным эффектам был необходим, что и в случае доминирования по отношению к генной мутации. Действительно, «ослабление» генов, находящихся в аномальных положениях (Добжанский, 1936, с. 376), указывает на то, что непропорционально большая доля однодозовой экспрессии доминантных генов определяется их отношениями с ближайшими соседями. Кроме того, функционально сбалансированные группы генов, влияющих на полигенные признаки, будут развиваться в пределах отдельных хромосом (Mather, 1941: см. стр. 67). В настоящее время мы должны рассматривать хромосомы не как чисто механические генные носители, а до известной степени как органические генные структуры.